
 Facebook
 Masuk dengan Email


Patofisiologi Hepatitis B
Patofisiologi hepatitis B melibatkan interaksi antara virus hepatitis B (HBV) dengan sistem imun inang, dimulai dari masuknya virus ke dalam hepatosit melalui reseptor NTCP, pembentukan cccDNA sebagai template persistensi, integrasi DNA virus ke genom inang, hingga respons imun yang menyebabkan nekroinflamasi dan progresi ke sirosis serta karsinoma hepatoseluler.[1,3,4,6]
Struktur dan Genotipe HBV
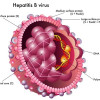
HBV adalah virus kecil berukuran sekitar 40 nanometer yang termasuk dalam keluarga Hepadnaviridae. Virus ini memiliki materi genetik berupa DNA sirkular, dengan panjang sekitar 3,2 kilobasa.
DNA tersebut terbungkus rapat di dalam inti virus yang disebut nukleokapsid, yang tersusun dari protein core hepatitis B (HBc). Nukleokapsid ini dilapisi oleh selubung lipid yang berasal dari membran sel inang, dilapisi tiga jenis protein permukaan (HBsAg): large (L), medium (M), dan small (S).
Genom HBV memiliki empat daerah gen yang saling tumpang tindih, yaitu S, PreC/C, P, dan X. Gen S menghasilkan protein permukaan (HBsAg). Gen PreC/C menghasilkan protein core (HBcAg) yang membentuk kapsid, serta antigen e (HBeAg) yang dilepaskan ke darah dan berperan dalam mengatur sistem imun.
Gen P menghasilkan enzim reverse polimerase/transkriptase yang penting untuk replikasi virus. Gen X menghasilkan protein X (HBx) yang berfungsi mengaktifkan transkripsi gen virus.[1–3]
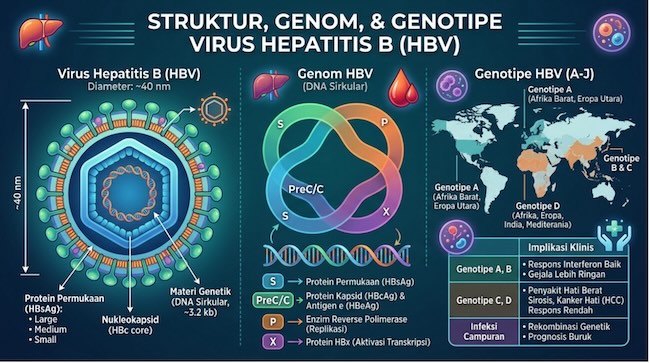
Gambar 1. Struktur dan Genotipe HBV
HBV dikelompokkan menjadi sepuluh genotipe (A–J) dengan distribusi geografis yang berbeda. Genotipe A umum ditemukan di Afrika Barat dan Eropa Utara, genotipe D tersebar di Afrika, Eropa, India, dan Mediterania, sedangkan genotipe B dan C umum ditemukan di Asia. Genotipe memengaruhi virulensi, patogenisitas, luaran klinis, dan respons terhadap terapi interferon.
Pasien dengan genotipe C atau D memiliki tingkat kehilangan DNA HBV dan serokonversi HBeAg yang lebih rendah setelah terapi interferon dibandingkan genotipe A atau B. Anak-anak yang terinfeksi genotipe A memiliki viral load lebih rendah dan gejala lebih ringan dibandingkan genotipe D.
Genotipe C dikaitkan dengan HBeAg positif lebih lama, DNA HBV lebih tinggi, serta penyakit hati yang lebih berat termasuk sirosis dan karsinoma hepatoseluler (HCC). Sementara itu, genotipe B dikaitkan dengan HCC pada pasien muda tanpa sirosis.
Infeksi campuran beberapa genotipe dapat menyebabkan rekombinasi genetik dan berhubungan dengan prognosis yang lebih buruk. Meskipun terdapat perbedaan replikasi dan patogenesis antar genotipe, dasar molekularnya masih belum sepenuhnya jelas.[9]
Proses Infeksi Sel Inang oleh HBV
Virus hepatitis B (HBV) adalah virus hepatotropik yang masuk ke hepatosit melalui interaksi antara domain preS1 pada protein permukaan besar (L-HBsAg) dengan reseptor polipeptida kotransport natrium taurokolat (NTCP), yaitu transporter asam empedu yang hanya terdapat pada sel hati.
Awalnya, virus berikatan lemah dengan proteoglikan heparan sulfat di permukaan sel, diikuti ikatan kuat dan spesifik dengan NTCP, kemudian masuk melalui endositosis. Setelah masuk, virion melepaskan selubungnya di sitoplasma, dan nukleokapsid yang membawa DNA sirkular relaks (rcDNA) bergerak menuju inti sel dengan bantuan mikrotubulus.
Di dalam inti, rcDNA dilepaskan dan diperbaiki menjadi DNA sirkular tertutup kovalen (cccDNA), yang merupakan mini-kromosom stabil dan menjadi cetakan untuk transkripsi semua mRNA virus serta RNA pregenomik (pgRNA) oleh RNA polimerase II host. pgRNA kemudian diekspor kembali ke sitoplasma untuk translasi protein virus.[1,2,9]
Enzim polimerase virus berikatan dengan sinyal epsilon pada pgRNA dan memicu pembentukan kapsid baru yang tersusun dari HBcAg, sehingga pgRNA dan polimerase terbungkus. Di dalam kapsid, pgRNA ditranskripsi balik menjadi rcDNA (sekitar 90%) atau DNA linier beruntai ganda (dslDNA).
Kapsid yang mengandung DNA ini kemudian dilapisi dengan selubung lipid yang mengandung HBsAg di retikulum endoplasma dan aparatus Golgi, lalu dilepaskan dari sel sebagai virion baru yang siap menginfeksi sel lain.[1,2]
Integrasi DNA HBV ke dalam Genom Inang
Integrasi DNA HBV ke dalam genom sel hati merupakan peristiwa penting dalam patogenesis hepatitis B kronis. Proses ini dimulai ketika dslDNA masuk ke nukleus dan disisipkan ke dalam DNA inang pada situs pemutusan untai ganda.
Berbeda dengan retrovirus, HBV tidak memiliki enzim integrase sendiri, sehingga integrasi memanfaatkan jalur perbaikan DNA inang, terutama non-homologous end-joining (NHEJ) dan microhomology-mediated end-joining (MMEJ).
DNA HBV yang terintegrasi umumnya tidak dapat bereplikasi karena promoter inti terpisah dari gen core dan polimerase, tetapi tetap dapat mengekspresikan HBsAg utuh dan protein HBx yang terpotong di ujung C. Seiring berjalannya infeksi, jumlah hepatosit yang mengandung integrasi meningkat karena integrasi yang terus terjadi akibat inflamasi kronis, hilangnya cccDNA saat sel membelah, dan ekspansi klonal sel-sel yang membawa integrasi.[9]
Peran Sistem Imun Inang
Patogenesis hepatitis B sangat dipengaruhi oleh faktor imun inang yang berperan ganda, baik dalam membersihkan virus maupun menyebabkan kerusakan hati. Respons imun bawaan dan adaptif saling berinteraksi menentukan apakah infeksi akan sembuh atau menjadi kronis.
Pada infeksi akut, sel T CD8+ spesifik HBV berperan dalam eliminasi virus melalui produksi IFN-γ dan granzim, namun pada infeksi kronis sel-sel ini mengalami kelelahan yang ditandai dengan peningkatan ekspresi reseptor inhibitorik seperti PD-1, Tim-3, dan CTLA-4, serta penurunan respons terhadap antigen. Interaksi PD-1 dengan PD-L1 pada sel Kupffer dan hepatosit semakin menekan respons sel T, sehingga virus dapat bertahan.
Sel NK juga berperan dalam kontrol awal infeksi, tetapi pada infeksi kronis fungsinya terganggu dengan penurunan produksi IFN-γ dan TNF-α, serta peningkatan ekspresi reseptor inhibitorik. Sel T regulator (Treg) meningkat dan mensekresi IL-10 yang menghambat fungsi sel NK dan sel T efektor, mendukung toleransi imun.
Di sisi lain, antibodi terhadap HBsAg dan HBcAg dapat memicu antibody-dependent cell-mediated cytotoxicity (ADCC) yang berkontribusi terhadap cedera hepatosit. Makrofag hati (sel Kupffer) memiliki peran ganda yaitu polarisasi M1 bersifat proinflamasi dan mendukung pembersihan virus, sedangkan polarisasi M2 yang dipengaruhi oleh HBeAg meningkatkan ekspresi PD-L1 dan menekan sel T CD8+, sehingga mempromosikan persistensi virus.
Keseimbangan antara respons imun yang efektif dan mekanisme penghindaran imun ini menentukan luaran akhir infeksi HBV, termasuk risiko sirosis dan karsinoma hepatoseluler.[9]
Proses Perjalanan Penyakit
Virus hepatitis B (HBV) ditularkan melalui inokulasi perkutan atau paparan mukosa dengan cairan tubuh yang terinfeksi. Periode inkubasi HBV umumnya antara 30-180 hari. Pada pasien imunokompeten dapat terjadi kesembuhan total, namun pada Sebagian kecil pasien dapat menjadi kondisi kronis, dengan definisi serologis adanya HBsAg lebih dari enam bulan.
Patogenesis penyakit hati akibat infeksi HBV terutama dimediasi oleh sistem imun inang, meskipun pada beberapa kondisi, HBV dapat mengakibatkan cedera sitotoksik langsung pada hati. HBsAg dan protein nukleokapsid lain yang muncul pada membran sel hati yang terinfeksi memicu lisis sel diinduksi sel T.[4]
Selain itu, cedera hati juga dapat terjadi melalui mekanisme non-imun, seperti yang terlihat pada pasien yang mendapat terapi imunosupresan, di mana HBV dapat mengalami reaktivasi dan menyebabkan kerusakan langsung. HBV diketahui menyebabkan hepatitis akut dan kronis, dengan perkiraan sekitar 10% infeksi akut berkembang menjadi penyakit kronis.[2,4]
Hepatitis B Akut
Hepatitis B akut umumnya merupakan penyakit yang sembuh sendiri dengan tingkat kematian kasus 0,5–1%. Orang dengan infeksi baru seringkali tanpa gejala, namun dapat muncul manifestasi klinis seperti gejala mirip flu, urin berwarna gelap, dan ikterus. Meskipun mayoritas individu imunokompeten pulih sepenuhnya, sebagian kecil dapat berkembang menjadi infeksi kronis.[2,5]
Hepatitis B Kronis
Hepatitis B kronis (CHB) didefinisikan oleh adanya HBsAg yang terdeteksi dalam darah atau serum selama lebih dari enam bulan. Infeksi ini seringkali berjalan tanpa gejala selama bertahun-tahun, namun dapat berkembang menjadi sekuele berat seperti sirosis dan karsinoma hepatoseluler (HCC) dalam periode sekitar 3 dekade.[5,8]
Pada hepatitis kronis, respons imun yang persisten dan tidak produktif terhadap HBV bertanggung jawab atas nekroinflamasi hati yang substansial. Sitokin tipe Th2 seperti IL-4 dan IL-10 berkaitan dengan infeksi HBV persisten yang menyebabkan kerusakan hati lebih berat. Sebaliknya, respons imun Th1 yang protektif penting untuk membersihkan HBV.
Selain respons imun host, komponen virus HBx juga berperan dalam progresi HBV kronis dengan menghambat respons sel T CD8+ dan menginduksi IL-6, IL-8, serta TNF-α proinflamasi, memicu peralihan dari inflamasi akut ke kronis dan mendorong proliferasi sel stelata hepatik (HSC).[2,5]
Perkembangan Menjadi Sirosis dan Karsinoma Hepatoseluler (HCC)
Sirosis, stadium lanjut penyakit hati, ditandai oleh fibrosis hepatik luas, nodularitas, perubahan arsitektur hati, dan gangguan sirkulasi hepatik. Baik HBV maupun HCV merupakan karsinogen yang sudah mapan yang dapat menyebabkan HCC.[2,5]
Nekroinflamasi hepatik persisten akibat interaksi imun virus-host diakui sebagai pendorong utama perkembangan HCC. Data epidemiologi menunjukkan 85–90% HCC terkait HBV mengandung DNA HBV yang terintegrasi ke dalam genom host.
Integrasi ini dapat mengaktifkan onkogen seperti cyclin E1 (CCNE1), telomerase reverse transcriptase (TERT), dan mixed-lineage leukemia 4 (MLL4), serta menyebabkan ketidakstabilan genetik yang berkontribusi pada transformasi maligna.[2]
Penulisan pertama oleh: dr. Sunita